
在一个温凉的万圣节夜晚,你和朋友们正骑着滑板车在社区里快乐地穿行,准备去收集心仪的糖果 [1, 2]。突然,滑板车的轮子无意中压过人行道,无意中压碎了几只正在散步的小昆虫 [2, 3]。
那些幸存下来的昆虫,是因为它们拥有更强大的“超能力”、能预知你的行进路线,还是因为它们比同伴更适应这个世界 ?显然不是。在这一随机事件中,幸存者并不是因为更适应环境,它们只是单纯的“运气好”;而被压碎的那些,仅仅是在错误的时间出现在了错误的地点 。
在生命演化的宏大剧场里,这种“纯粹的运气”扮演着超乎想象的重要角色。这便是遗传漂变(Genetic Drift)——一个不看实力、只看运气的演化游戏 [4, 5]。今天,就让我们一起走进这个由随机性主导的微观世界,看看运气是如何塑造地球生命的。
一、 命运的色子:弹珠与细菌的“概率抽样”
要理解遗传漂变,我们得先把它与大名鼎鼎的自然选择(Natural Selection)做个对比 [6, 7]。自然选择是“适者生存”,它会偏爱那些能提高生存和繁衍优势的基因 [4, 8]。但遗传漂变完全是随机的,没有任何方向性,它只受到随机概率的支配 [5, 9]。
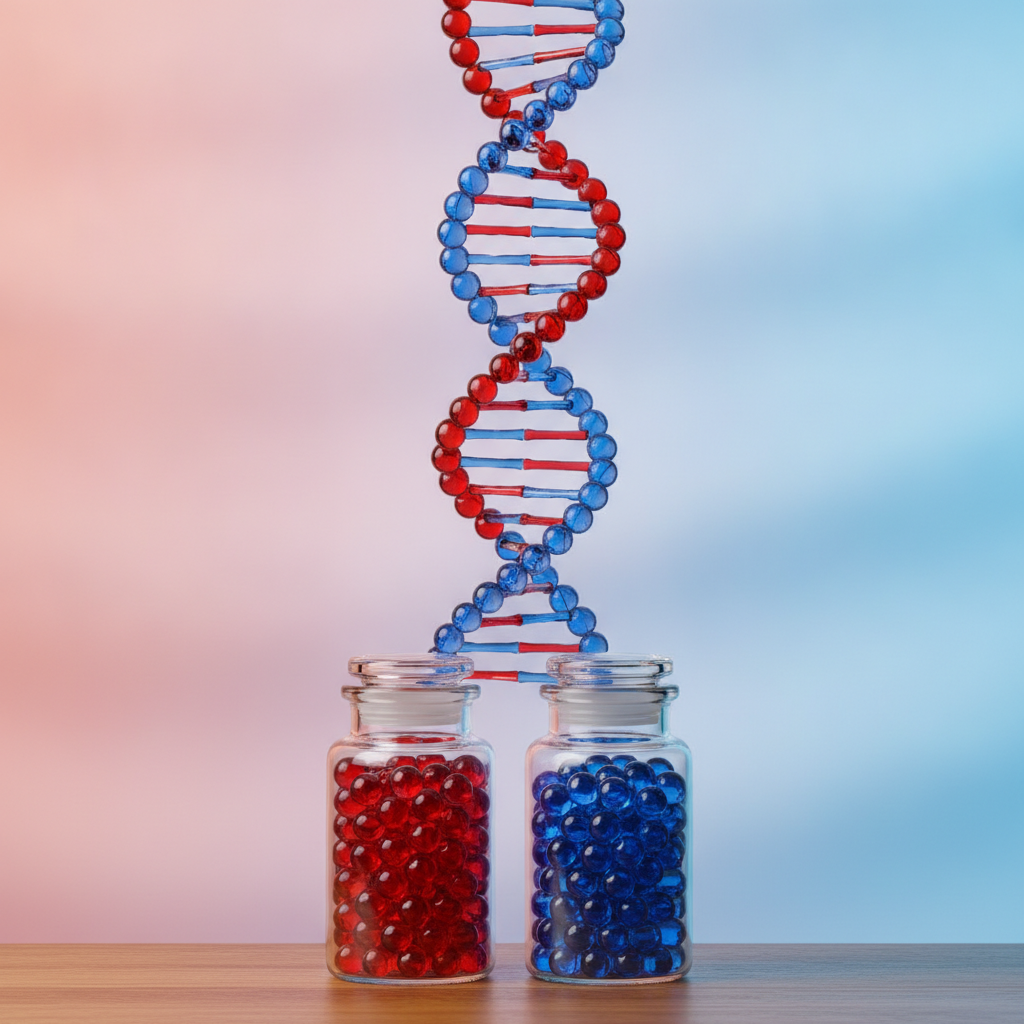
为了说清楚这个机制,科学家们常使用一个“玻璃罐与弹珠”的经典比喻 :
假设一个玻璃罐里装有20颗弹珠,代表一个由20个个体组成的群体 。其中10颗是红色的,10颗是蓝色的,分别代表某种基因的两种不同形式(等位基因),此时两种基因的频率均为0.5 [10, 11]。为了繁衍下一代,我们闭上眼睛从罐子里随机摸出一颗弹珠,在新的罐子里放入一颗同颜色的“子代弹珠”,然后将原弹珠放回 。
当我们重复这个过程20次,填满第二个罐子时,奇妙的事情发生了:除非运气极好,否则新罐子里几乎不可能刚好又是10颗红、10颗蓝 。一旦红蓝比例发生偏差(例如变成了11红、9蓝),等位基因的频率就发生了一次随机波动 [10, 12]。如果把这个游戏一代代玩下去,基因频率就会像无规则漂移的醉汉一样,忽高忽低 [13, 14]。在漫长的岁月里,某种颜色的弹珠可能会在某一代彻底没有被抽中,从而在群体中永久消失;而另一种颜色则会达到100%的频率,实现“固定(Fixation)” [14, 15]。在小种群中,这种“固定”或“流失”往往只需几代就会发生 。
即使在极其微小的生命身上,这种随机抽样误差(Sampling Error)也无处不在 [16, 17]。假设一滴溶液中生活着一大群细菌,其中等位基因A和B各占一半(频率均为1/2) 。随着水分蒸发,这滴溶液缩水到只能维持4个细菌的生命,其余细菌全部随机死亡 [18, 19]。
数学计算表明,这4个幸存者刚好保持“2个A、2个B”的组合概率只有6/16(即37.5%);而红蓝失衡(即发生遗传漂变)的概率高达10/16(即62.5%) 。也就是说,纯粹的随机抽样,本身就更倾向于打破原有的基因平衡 。
在建立这些概率模型时,群体遗传学家们提出了不同的数学工具 [20, 21]。最经典的赖特-费舍尔模型(Wright–Fisher model)假设世代不重叠,通过二项分布来模拟每一代独立随机抽样的过程 ;而莫兰模型(Moran model)则假设世代重叠,每一时间步仅随机选择一个体繁衍、一个体死亡 。尽管两者给出的定性结果相似,但在莫兰模型中,遗传漂变运行的速度要比前者快上一倍 。
二、 赖特与费舍尔的世纪争论:谁才是进化的主角?
在20世纪中叶,现代演化综论(Modern Synthesis)成型之初,关于演化动力的主次问题,科学界曾爆发过一场极具火药味的学术交锋 [24, 25]。论战的双方便是群体遗传学的两位泰斗:罗纳德·费舍尔(Ronald Fisher)与休厄尔·赖特(Sewall Wright) [21, 24]。
费舍尔是一位坚定的“自然选择至上论者” 。他认为,自然界中的生物种群规模通常足够庞大(有效种群大小通常在一万以上),在如此庞大的基数下,大数定律会让随机漂变的影响微乎其微 [17, 26]。在他眼里,演化是一场由自然选择主导的、漫长而稳定的适应性攀升过程 。
而赖特则持有完全不同的洞察 。凭借在动物育种实验中的经验,他更关注小规模、相对隔离的亚群中的基因相互作用 。赖特提出了著名的“适应度景观(Adaptive Landscape)”理论 [27, 28]:
他认为,一个物种的演化就像在起伏的山峦中寻找最高的“适应度山峰” [27, 28]。如果只靠自然选择,种群很容易被困在某个局部的矮峰上无法自拔(因为下山意味着适应度降低,会被自然选择无情淘汰) [27, 28]。而在小种群中,强烈的遗传漂变可以作为一种随机推力,强行将种群推下矮峰、跨越“适应度低谷”,从而有机会在自然选择的指引下攀登上海拔更高、更完美的“全新巅峰” [27, 28]。
在这场力量的较量中,决定胜负的生死线由选择系数(Selection Coefficient, 记为 \\(s\\))和有效种群大小(Effective Population Size, 记为 \\(N_e\\))共同划定 [29, 30]:
当选择系数 \\(s\\)(代表某基因带来的生存优势)显著大于 \\(1/N_e\\) 时,自然选择占据绝对主导,能够高效地筛选优势基因或清除有害突变 [8, 30]。然而,一旦优势极其微弱,使得 \\(s < 1/N_e\\) 时,自然选择便会“失明”,遗传漂变将彻底接管战场 [29, 30]。此时,哪怕是一个极为有利的新突变,在刚出现、频率极低时,也极易被随机漂变无情地抹去 。
三、 命运的窄门:瓶颈效应与奠基者效应的真实悲剧
当一个庞大的种群在极短时间内因某些随机事件而极度缩水时,遗传漂变的力量就会被放大到极致 。这主要表现为两种经典形式:瓶颈效应(Population Bottleneck)与奠基者效应(Founder Effect) [32, 33]。
#### 1. 瓶颈效应:大灾难后的“基因窄门”
瓶颈效应是指由于火山爆发、洪水或人类捕杀等随机灾难,导致种群数量暴跌,仅有极少数个体幸存的现象 [34, 35]。在这种情况下,谁能活下来跟“适应力”毫无关系,纯粹看运气 。
科学界最震撼的瓶颈案例,莫过于北象海豹(Northern Elephant Seal)的遭遇 [34, 37]。
19世纪,由于人类疯狂的商业捕杀,生活在北美西海岸的北象海豹几乎灭绝,最惨烈时可能仅有约50只幸存下来,被困在墨西哥的一个孤立岛屿上 [37, 38]。虽然在保护下,如今它们的种群已经反弹到了15万只以上,但那次毁灭性的打击在它们的基因里刻下了无法磨灭的痕迹 。
为了重现这段历史,科学家们前往史密森尼学会,从瓶颈期前(19世纪前)的11具北象海豹头骨标本中提取了DNA,并与现代北象海豹进行了对比 [39, 40]。
结果令人心惊:
- 遗传多样性雪崩:瓶颈期前的象海豹线粒体DNA拥有极高的多样性,而现在的北象海豹个体之间基因惊人地一致,几乎丢失了绝大部分变异 [40, 41]。相比之下,未曾遭受毁灭性捕杀的南象海豹则依然保持着非常健康的遗传多样性 [38, 42]。
- 骨骼形态失衡:更残酷的发现存在于骨骼形态上 。研究人员测量了象海豹下颌骨的左右对称性 。南象海豹和瓶颈前北象海豹的下颌骨左右两侧呈现出完美的线性对称关系(r值极接近1.0) ;而瓶颈后的北象海豹,其测量数据却杂乱无章,表现出严重的身体不对称性 。这表明,基因多样性的丧失已经严重干扰了它们的正常发育,使它们在面对未来的气候变化或新流行病时,防线变得极其脆弱 [44, 45]。
类似的故事也发生在大草原榛鸡(Greater Prairie Chicken)身上,在伊利诺伊州,它们的数量从1900年的1亿只 plummeted 到1990年代的约50只,导致基因多样性丧失,如今正遭受着极低的繁殖成功率折磨 。
#### 2. 奠基者效应:少数先驱的“偏科”遗产
奠基者效应则是指一小群个体从母群中迁徙出来,去往一块新土地(如一个孤立的荒岛)开辟新家园 [46, 47]。这少数几个“奠基者”所携带的基因样本,往往无法代表原本庞大群体的全貌 [46, 48]。
太平洋上的平格拉普环礁(Pingelap Atoll)为我们提供了一个关于人类等位基因随机漂变的极端范例 [49, 50]。
1700年代,一场超强台风席卷了这片群岛,几乎杀死了岛上的所有人,最终只有大约20人幸存下来 [50, 51]。这20个幸存者便成了今天平格拉普人的全部祖先 。
不幸的是,这20位“奠基者”中,有一位岛上的领袖(Nahnmwaki Mwanenised)偶然携带了一种极为罕见的常染色体隐性遗传病基因——全色盲(Achromatopsia),患者的视网膜中没有起作用的细胞,眼中只有黑白灰的无色世界 [51, 52]。
在正常人口(如美国)中,这种病极为罕见,发病率仅约三万三千分之一 。但在平格拉普环礁上,由于这极其微小的奠基者基数以及随后的近亲结婚,全色盲基因频率在漂变中疯狂飙升 [52, 53]。如今,岛上已有近10%的人饱受完全色盲的困扰,这里也因此被称为“色盲之岛” [52, 53]。
另一个著名的例子是1744年移民到美国宾夕法尼亚州的阿米什人(Amish) 。由于宗教信仰,他们长期保持与世隔绝的内部通婚 。当年奠基者移民中的一对夫妇偶然携带了罕见的埃利伟氏综合征(Ellis–Van Creveld syndrome,表现为侏儒和多指)的隐性基因 。经过多代近交和严重的遗传漂变,这种在外界极其罕见的疾病,如今在阿米什社群中的发病率远远超出了普通人群 。
四、 木村资生与中性演化:人类基因组里的漂变痕迹
长期以来,达尔文的“自然选择说”被奉为金科玉律,人们习惯于为每一个生物特征寻找“有什么用”的解释 [25, 55]。直到1968年,日本遗传学家木村资生(Motoo Kimura)抛出了一颗震撼科学界的深水炸弹——分子演化的中性学说(Neutral Theory of Molecular Evolution) [24, 56]。
木村资生指出,如果我们把视线从宏观的“长脖子、保护色”拉近到微观的DNA序列和蛋白质分子水平,就会发现:绝大多数等位基因的改变,在生存适应度上其实都是“中性”的——它们既不比原来更好,也不比原来更差 。
既然这些变异是中性的,自然选择自然会对它们“视而不见”,它们的命运就完全交给了大自然抛掷的硬币(遗传漂变) [57, 58]。基因组在分子水平上的演化,本质上是由新突变的不断产生,以及遗传漂变对这些中性突变无休止的随机筛选共同编织的动态过程 [57, 58]。
这一理论不仅解释了为什么物种内部保留了如此浩瀚且看似无用的DNA多态性,更为我们提供了一把测量时间的尺子——分子钟(Molecular Clock)。因为中性突变积累的速度是恒定的,通过对比两个物种DNA的差异,并结合接合理论(Coalescent theory),我们就能倒推出它们在多少年前分道扬镳,以及它们历史上经历过怎样的种群收缩(瓶颈) 。
五、 漂变屏障:为什么细菌的基因组比人类更精简?
既然遗传漂变无处不在,为什么不同物种的基因组结构大相径庭?为什么细菌的基因组如此紧凑,而我们人类的基因组却显得臃肿不堪?
这就要引入演化遗传学中著名的“漂变屏障(Drift Barrier)”理论 [60, 61]:
在生命演化中,突变带来的影响大多是中性或有害的 。在黑腹果蝇(Drosophila melanogaster)的研究中,科学家们发现如果突变改变了蛋白质,约70%的这类突变都会产生 damaging(损害性)的影响,而剩下的则是中性或微弱有益的 。为了生存,物种必须不断清除这些源源不断的有害“突变垃圾” 。
- 巨型种群(大 \\(N_e\\))的严苛筛选:像细菌这样有效种群极为庞大的物种,其 \\(1/N_e\\) 极小 。这意味着哪怕是一丁点无用的基因赘赘(例如冗余的非编码DNA)带来的代谢负担(极小的有害选择系数 \\(s\\)),都能跨过“漂变屏障”被自然选择敏锐地察觉并清除 。因此,它们的基因组高度精简,几乎没有浪费 。
- 小型种群(小 \\(N_e\\))的无奈臃肿:相比之下,像人类这样历史有效种群数量其实相对较小的哺乳动物,我们的 \\(1/N_e\\) 较大 。由于漂变力量太强,自然选择根本无法清除那些杀伤力极弱的“轻微有害突变”(即 \\(s < 1/N_e\\) 的情况) [29, 61]。结果,我们的基因组中充斥着大量的内含子(Introns)和转座子(Transposable Elements)等“基因垃圾”,显得无比臃肿和复杂 。
从某种意义上说,人类基因组的复杂性,并不是自然选择精心雕琢的杰作,反而是在强烈的随机漂变面前,自然选择“无能为力”留下的痕迹 。
结语:在必然与偶然之间
遗传漂变的研究向我们展示了一幅截然不同的生命演化图景 。
生命并非由一个全知全能的“自然选择建筑师”精心设计出的完美蓝图,而更像是一部在狂风暴雨中,由必然的选择与偶然的运气共同书写的荒诞史诗 [9, 63]。
那些在地球历史上繁盛一时的物种,那些在复杂生存竞争中胜出的强者,在某一个环境剧变的拐角,可能仅仅因为一次台风、一记不期而至的硬币投掷,就将千百万年积累的基因宝库葬送在概率的深渊里 [50, 52]。而我们人类自己,能拥有如此庞大复杂的基因组,能在这颗星球上繁衍至今,其背后又经历了多少次化险为夷的随机碰撞 ?
演化的迷人之处或许就在于此:它既有铁律般的优胜劣汰,又永远为纯粹的偶然与运气保留着最宽广的舞台 [9, 63]。
📊 我们可以使用 Python 模拟不同种群大小(如 \\(N=50\\) 和 \\(N=5000\\))下的等位基因漂变曲线 [64, 65],为您直观展示大数定律是如何在庞大种群中平息随机涨落、而小种群又是如何迅速走向单一固定的 [15, 65]。想让我为您生成这个模拟图表吗?